Тилакосмилы — Thylacosmilus
Клада Млекопитающеобразные (Mammaliaformes)
Класс Млекопитающие (Mammalia)
Подкласс Териеобразные (Theriiformes)
Клада Голотерии (Holotheria)
Клада Трехнотерии (Trechnotheria)
Клада Кладотерии (Cladotheria)
Клада Затерии (Zatheria)
Клада Трибосфениды (Tribosphenida)
Клада Терии (Theria)
Клада Метатерии (Metatheria)
Клада Сумчатообразные (Marsupialiformes)
Отряд †Спарассодонты (Sparassodonta)
Надсемейство †Боргиеноиды (Borhyaenoidea)
Клада †Тилакосмилообразные (Thylacosmiliformes)
Семейство †Тилакосмиловые (Thylacosmilidae)
Род †Тилакосмилы (Thylacosmilus)
Вид †Thylacosmilus atrox
Тилакосмилы (Thylacosmilus Riggs, 1933) — монотипический род семейства тилакосмиловых (Thylacosmilidae (Riggs, 1933) Goin et Pascual, 1987), происходящий из позднего миоцена - позднего плиоцена Южной Америки.
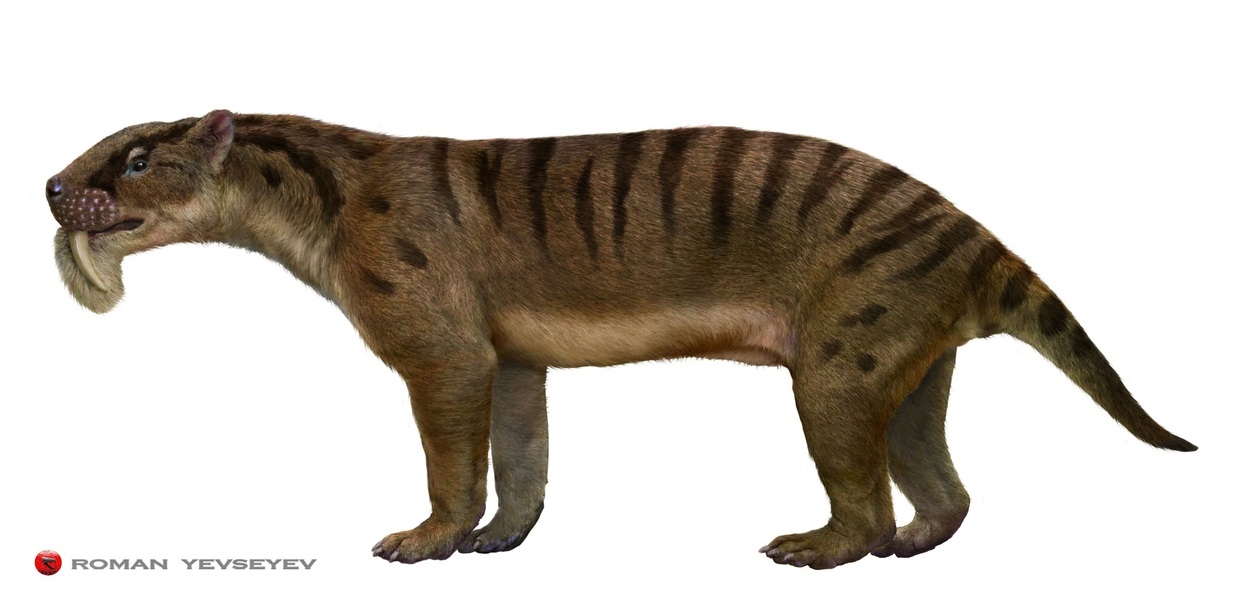
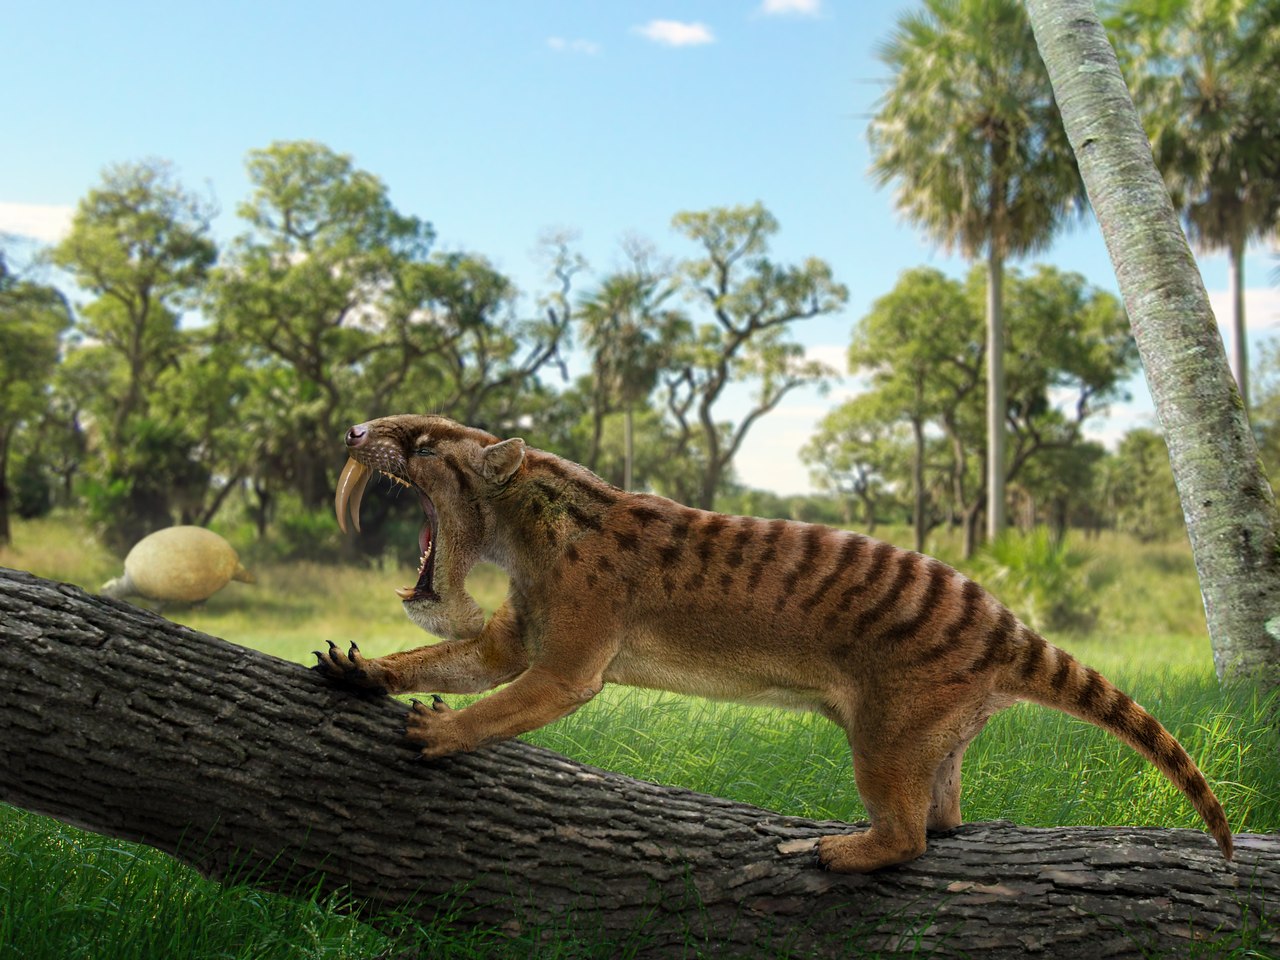
Реконструкция внешнего облика тилакосмила (Thylacosmilus atrox). Автор — Р. Евсеев.
Синонимы: Achlysictis Ameghino, 1891 (частью); ? Acrohyaenodon Ameghino, 1904 (? частью); ? Hyaenodonops Ameghino, 1908; Notosmilus Kraglievich, 1960.
Единственный установленный вид — Thylacosmilus atrox Riggs, 1933 (тип). Его остатки обнаружены в Аргентине (провинции Буэнос-Айрес, Катамарка, Кордова, Ла-Пампа, Энтре-Риос). Они датируются поздним миоценом - поздним плиоценом (формации Итусаинго, Эпекуэн, Серро-Азул, Брочеро и Монте-Эрмосо; уайкерский - чападмалальский века). Синонимы: Achlysictis lelongi Ameghino, 1891; Achlysictis pungens Ameghino, 1904; ? Hyaenodontops chapalmalensis Ameghino, 1908; ? Acrohyaenodon chapalmalensis Ameghino, 1908; Thylacosmilus lentis Riggs, 1933; "Achlysictis atrox" (Riggs, 1933); Notosmilus pattersoni Kraglievich, 1960.
В 1926 г. палеонтологическая экспедиция, организованная Филдовским музеем естественной истории в Чикаго, США, собрала многочисленные окаменелости млекопитающих в позднемиоценовых отложениях формации Итусаинго близ Корраль-Кемадо в провинции Катамарка на севере Аргентины. Ряд образцов был идентифицирован как представляющий новый тип сумчатых, родственных Borhyaenidae, и в 1928 г. представлен Американскому палеонтологическому обществу, хотя и без названия. В 1933 г. американский палеонтолог Элмер С. Риггс дал этим находкам предварительное описание и установил на их основе новый род Thylacosmilus с 2 видами — типовым Thylacosmilus atrox и Thylacosmilus lentis, отметив при этом, что их полное описание готовится и будет опубликовано позже. Присвоенное роду наименование образовано древнегреческими словами θύλαϰος и σμίλη, означающими соответственно "сумка, мешочек" и "резец, стамеска", указывая на сумчатую природу и увеличенные клыки этих животных. Название типового вида переводится как "жестокий". Риггс заявил, что это "одно из самых уникальных плотоядных млекопитающих всех времен".
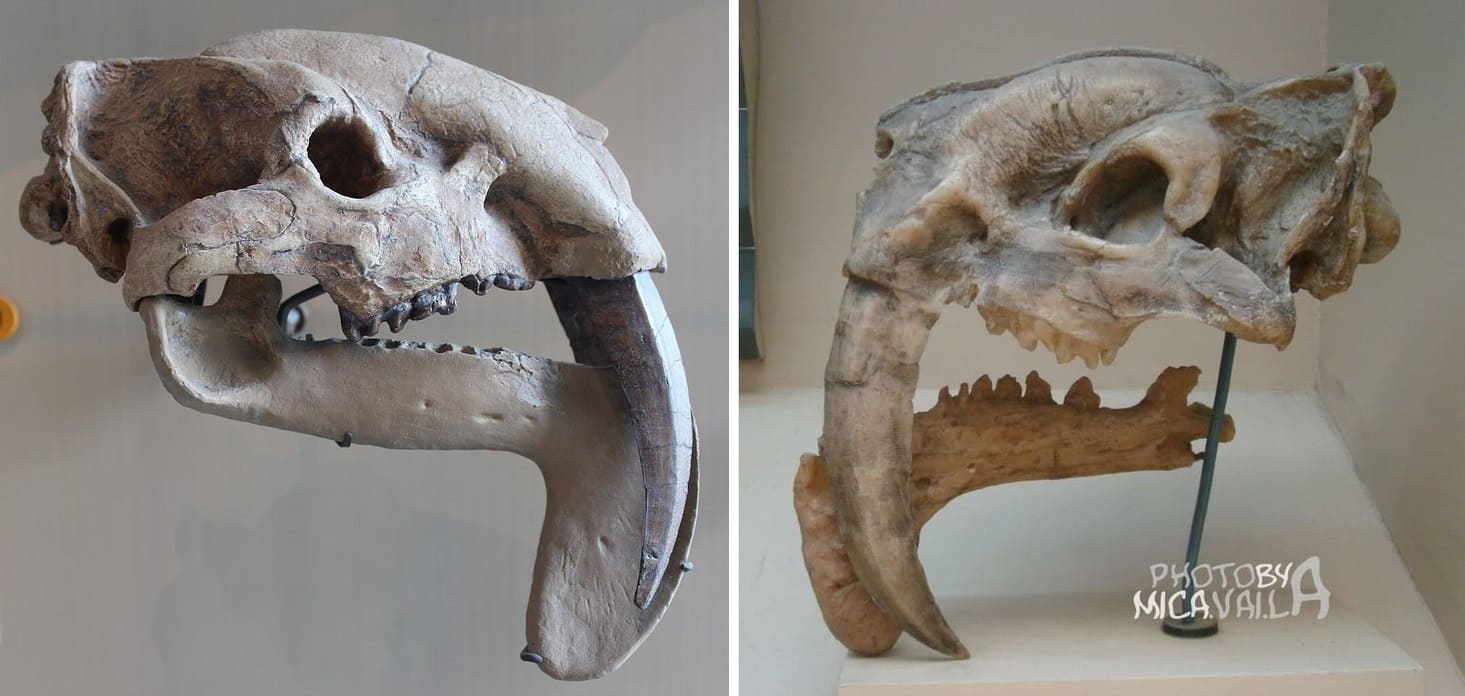
Неполные черепа с нижними челюстями тилакосмила (Thylacosmilus atrox). Слева: образец AMNH 32780; Американский музей естествознания, Нью-Йорк.
Типовой экземпляр
Thylacosmilus atrox, найденный Риггсом и его ассистентом, включает череп с обломанным концом морды и сохранившимися зубами правой стороны, залегающий отдельно левый клык, фрагменты нижней челюсти, плечевую кость, поврежденные лучевую и бедренные кости, а также элементы стопы. Разрозненные и отсутствующие части черепа и нижней челюсти были реконструированы и соединены вместе. Экземпляр, обнаруженный американским палеонтологом Робертом К. Торном и обозначенный как паратип
Thylacosmilus atrox, состоит из неполных черепа и нижней челюсти, 7 шейных, 2 грудных, 2 поясничных и 2 крестцовых позвонков, бедренной кости, большеберцовой кости, малоберцовой кости и различных костей стопы. Паратип примерно на четверть меньше голотипа и, возможно, принадлежит молодой взрослой особи. Типовой экземпляр второго вида,
Thylacosmilus lentis, был найден в нескольких километрах от места обнаружения голотипа
Thylacosmilus atrox немецким биологом Рудольфом Шталекером. Он представляет собой фрагмент черепа с сохранившимися зубами правой стороны, имеющий примерно такие же размеры, как паратип
Thylacosmilus atrox. После того, как окаменелости были отпрепарированы и сравнены с остатками более известных боргиенид из формации Санта-Крус, Риггс в 1934 г. опубликовал их полное описание.
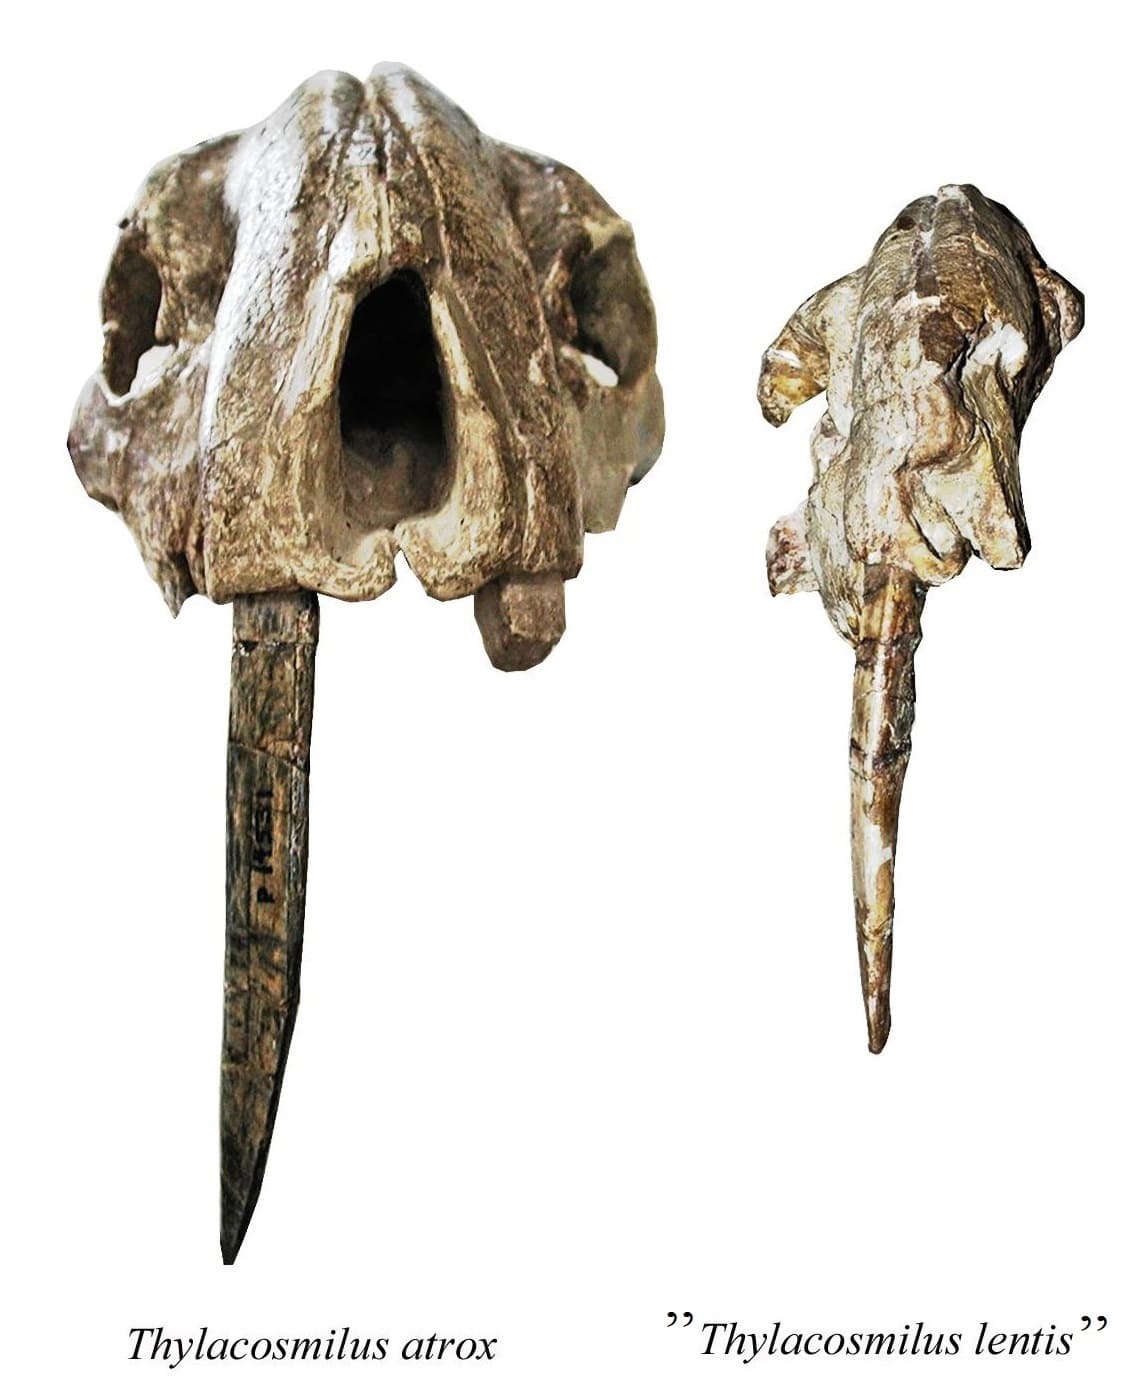
Неполные черепа тилакосмила (Thylacosmilus atrox); спереди.
Первые находки окаменелостей тилакосмила одновременно являются и наиболее полными из когда-либо совершенных. В последующие годы на севере и востоке Аргентины были обнаружены более фрагментарные образцы. Риггс и американский палеонтолог Брайан Паттерсон в 1939 г. сообщили, что изолированный клык, предварительно отнесенный аргентинским палеонтологом Лукасом Краглиевичем в 1934 г. к роду Achlysictis или Stylocynus, принадлежит роду Thylacosmilus. В 1965 г. были найдены передняя часть черепа и частичная правая ветвь нижней челюсти. В своей диссертации 1972 г. аргентинский палеонтолог Хорхе Зетти предположил, что Thylacosmilus atrox и Thylacosmilus lentis представляют собой один вид, и американский палеонтолог Ларри Г. Маршалл согласился с этим в 1976 г., указав, что отличительные признаки этих видов имеют сомнительную таксономическую ценность и, вероятно, обусловлены возрастными и половыми различиями. Ученый также затруднялся объяснить, как два симпатрических вида (родственные виды, которые жили в одной и той же области в одно и то же время) могут быть практически идентичны в своих специализациях. Кроме того, Маршалл предположил, что младшим синонимом Thylacosmilus может являться Hyaenodonops, хотя по разрозненным зубам последнего это доказать невозможно.
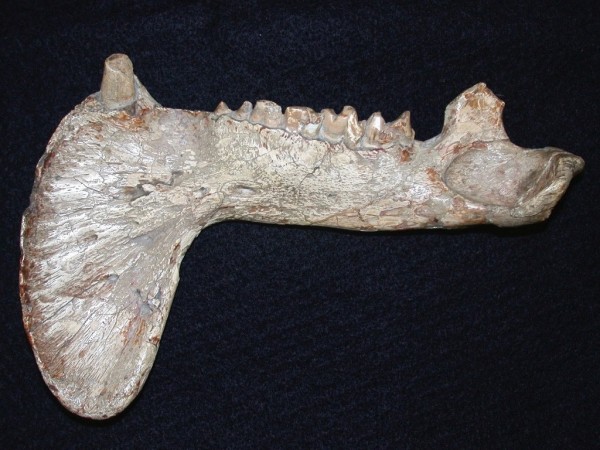
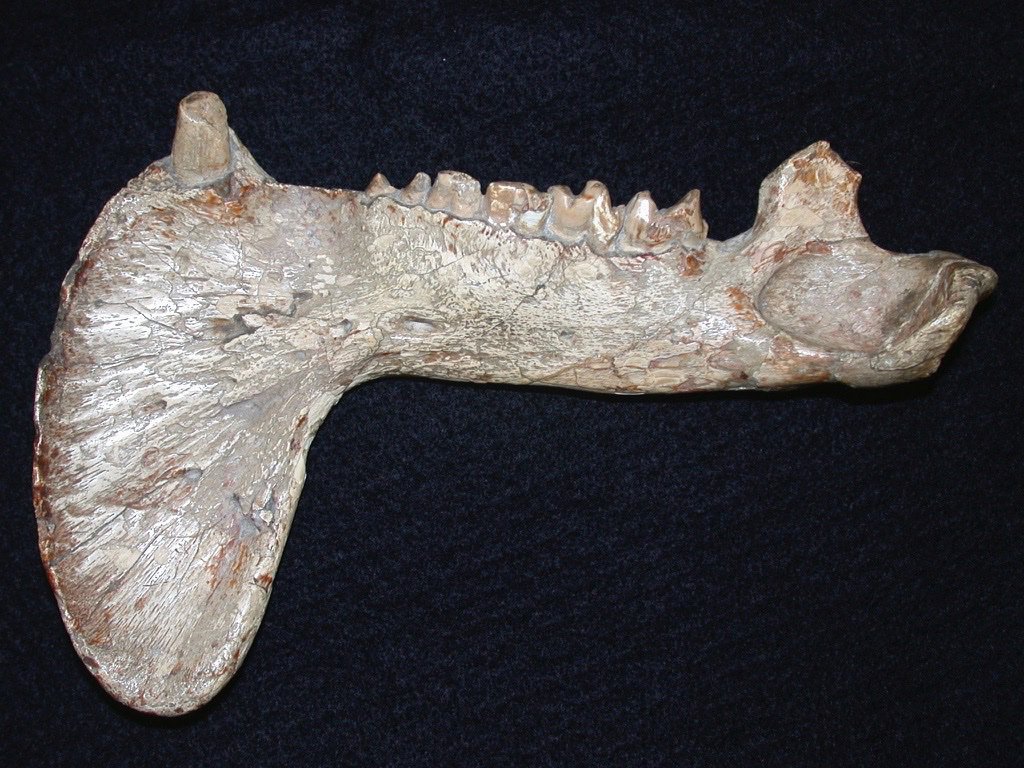
Ветвь нижней челюсти тилакосмила (
Thylacosmilus atrox); слева снаружи.
К моменту публикации работы Риггса наука уже около столетия знала о плацентарных саблезубых хищниках, однако обнаружение сумчатого животного, которое в условиях изоляции Южной Америки приобрело сходные черты, стало полной неожиданностью. Австор счел описанный им род достаточно своеобразным, чтобы учредить для него новое подсемейство Thylacosmilinae в составе Borhyaenidae. На протяжении многих десятилетий он оставался единственным известным представителем своей эволюционной линии. Более поздние исследования показали, что Thylacosmilus настолько сильно отличается от прочих боргиенид, что было признано обоснованным выделение его в отдельное семейство Thylacosmilidae. Столь значительные различия сделали отсутствие переходных форм в палеонтологической летописи еще более интригующим. Лишь в 1990-х гг. в среднемиоценовых отложениях Колумбии был обнаружен второй, более примитивный род тилакосмилид — Anachlysctis. Позднее в Аргентины был открыт близкий по возрасту Patagosmilus, занимающий промежуточное между более примитивным Anachlysctis и продвинутым Thylacosmilus.
Строение и функции
Размеры тилакосмила одни из крупнейших в его семействе и сопоставимы с таковыми современного ягуара (Panthera onca). Оценочная длина его тела без учета хвоста составляет 125-150 см, высота в холке — 55-65 см, вес — 50-120 кг. Таким образом, тилакосмил представлял собой достаточно коренастого зверя. Несмотря на общее сходство с саблезубыми кошками (Machairodontinae), своим сложением он больше напоминал других хищных сумчатых, что особенно проявлялось в строении позвоночника, таза и лап.
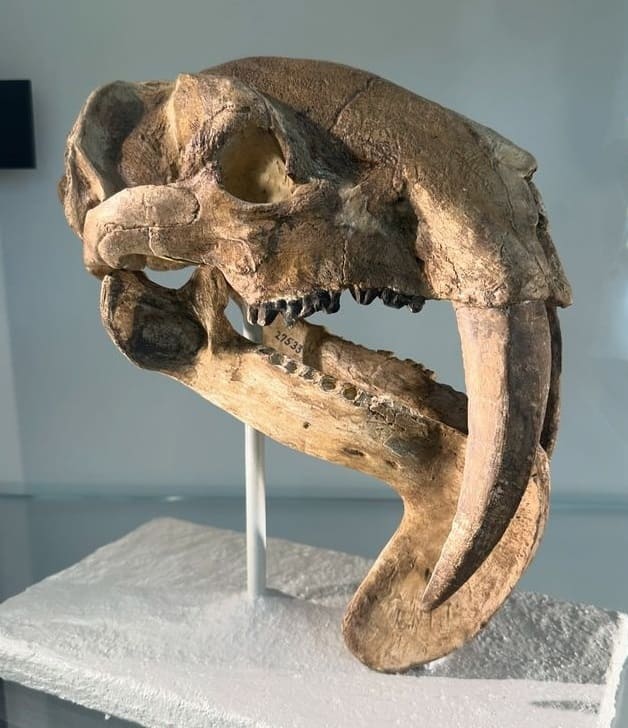
Реставрированный череп с нижней челюстью тилакосмила (Thylacosmilus atrox).
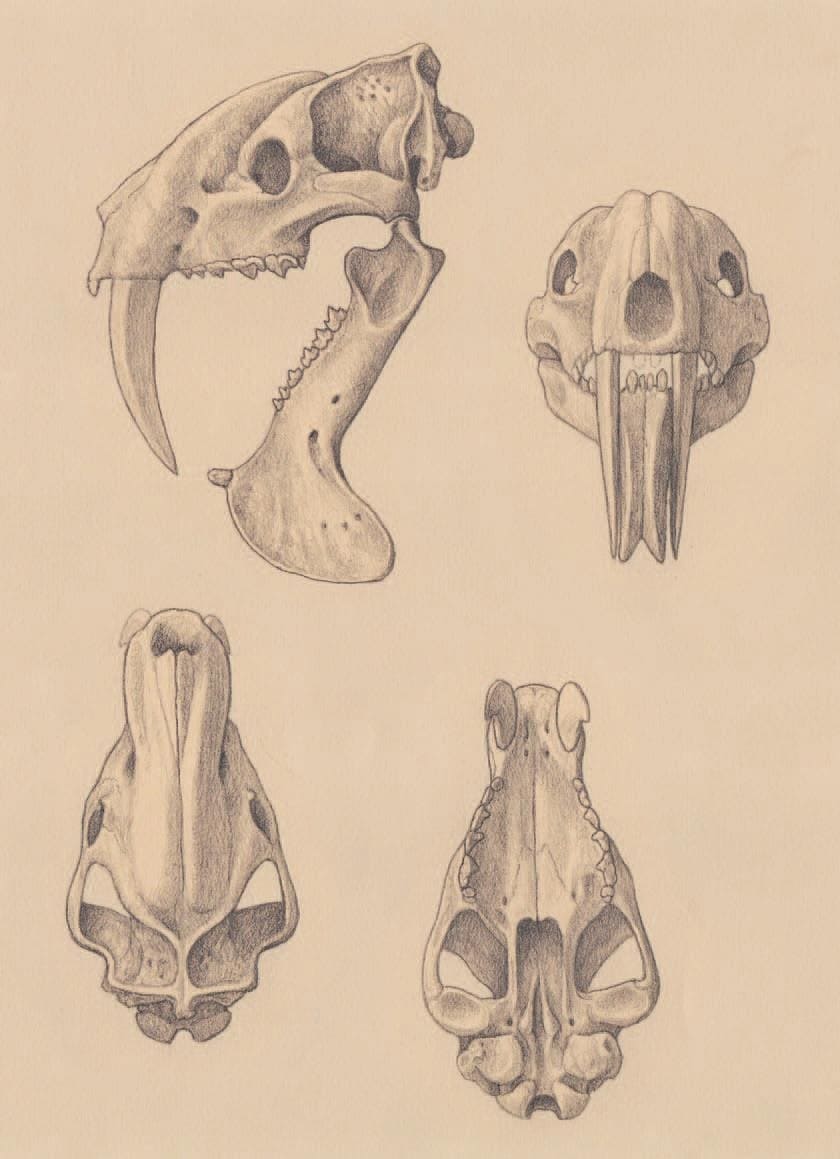
Череп тилакосмила достигает 26 см в длину и характеризуется общей укороченностью. Его лицевой отдел очень массивный, а морда заметно сужается кпереди. Предчелюстные кости на найденных образцах не сохранились. Носовые кости длинные, узкие и сжатые с боков, они образуют небольшой клин и уходят под верхнечелюстные кости. Последние очень развиты, их верхние отростки проходят далеко позади глазниц и там расширяются. Выпуклые верхние поверхности верхнечелюстных костей скульптированы обширной сетью борозд и ямок. Такая текстура свидетельствует о развитии сети поверхностных кровеносных сосудов, что может указывать на наличие кератиновой структуры, прикрывающей морду сверху.
Глазницы небольшие и низко расположенные; в отличие от плацентарных хищников, они полностью замкнуты. Глазные яблоки были округлыми и сидели неглубоко. Подглазничное отверстие относительно невелико, по размеру не сильно отличающееся от такового других спарассодонтов, но уступающее подглазничному отверстию саблезубых кошек. Ушная капсула небольшая, наружный слуховой проход открывается латерально. В отличие от представителей семейства Hathliacynidae, алисфеноид без больших барабанных отростков. От других спарассодонтов тилакосмил отличается наличием больших околобарабанных пространств, проникающих во все кости, ограничивающие среднее ухо. Установлено, что его способность воспринимать высокие звуковые частотыа была развита меньше, чем у Borhyaena. Небо широкое и сводчатое.
Прорисовки реконструированного черепа с нижней челюстью тилакосмила (Thylacosmilus atrox). Автор — М. Антон.
Мозговой отдел черепа небольшой. Вследствие разрастания верхнечелюстных костей лобные кости небольшие, наиболее широкие у верхних краев глазниц и далее суживающиеся, не участвующие у взрослой особи в формировании сагиттального гребня. Сагиттальный гребень короткий и высокий. Имелись мощные височные мышцы. Вся архитектура короткого и высокого черепа с круто спадающим лбом усиливает его к вертикальным нагрузкам при ударе клыками по кривой сверху вниз.
Затылочный гребень хорошо развит, что свидетельствует о наличии мощной шейной мускулатуры, крепившейся к затылку и позволяющей совершать сильные движения головой вниз и назад. Подобие в строении затылочного отдела черепа тилакосмила и саблезубых кошек позволяет предполагать, что группа мышц шеи, прикреплявшихся к черепу, у этих животных в анатомическом и функциональном отношениях была сходной.
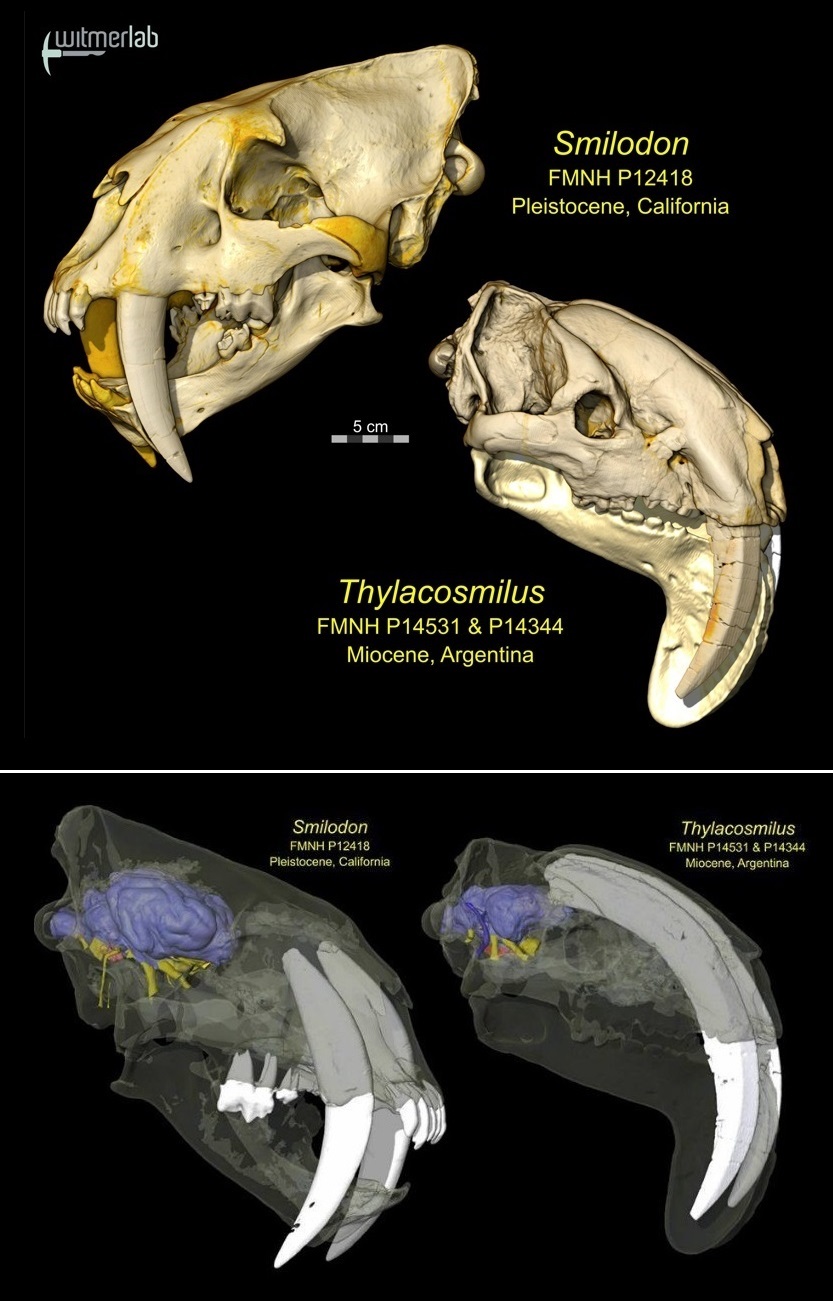
Трехмерные компьютерные модели черепа с нижней челюстью и головного мозга смилодона (Smilodon fatalis) и тилакосмила (Thylacosmilus atrox); масштаб не соблюден.
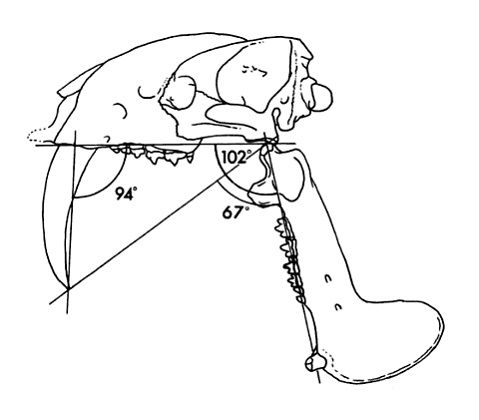
Скуловые отростки небольшие, а нижнечелюстная мускулатура была довольно слабой и крепилась практически к самому концу челюсти. Ветвь нижней челюсти прямая и узкая, нижнечелюстной угол короткий. Все это, а также проведенный биомеханический анализ свидетельствует о том, что тилакосмил не обладал мощными укусом и хваткой челюстных мышц. Согласно расчетам, сила его укуса составляла всего 38 ньютонов, что уступает этому показателю даже у домашней кошки. (Стоит отметить, что саблезубые хищники в принципе не могут похвастать сильными челюстями — скажем, у смилодона (Smilodon fatalis), который был размером со льва (Panthera leo), укус был почти втрое слабее львиного.) Однако благодаря тому, что челюстной сустав тилакосмила сильно опущен вниз, этот хищник мог чрезвычайно широко открывать свою пасть, пуская в ход основное оружие убийства — саблевидные верхние клыки. При максимальном открывании пасти нижняя челюсть становилась к черепу под углом приблизительно в 100 °.
Схема черепа тилакосмила (Thylacosmilus atrox) с максимально отведенной нижней челюстью.
Зубная система тилакосмила демонстрирует целый ряд специфических особенностей. Его реконструированнная зубная формула — I1/i1, С1/с1, Р2/р2, М4/m4 = 32. Поскольку не сохранилось ни одного экземпляра с неповрежденными предчелюстными костями, верхние резцы неизвестны, однако о их наличии можно судить по следам износа на внутренней поверхности нижних клыков. По всей видимости, верхние резцы были колышкообразными и совсем небольшими, что позволяло более эффективно использовать находящиеся за небольшими диастемами клыки — вонзать их в плоть жертвы максимально глубоко, практически на всю длину коронки. Нижние резцы также развиты слабо и сильно сужены. Это сильно контрастирует с такими хищниками, как саблезубые кошки, обладавшими мощными резцами, помогавшими им разделывать добычу.
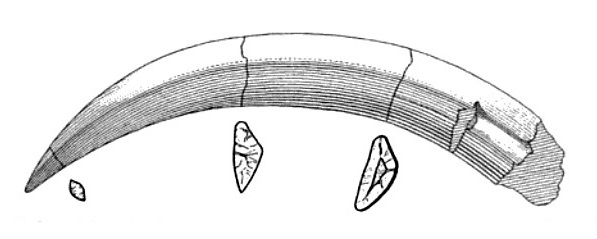
Прорисовки верхнего левого клыка тилакосмила (
Thylacosmilus atrox) слева снаружи и в поперечном сечении.
Верхние клыки очень мощные и длинные (длина их коронок около 15 см) — относительно длиннее, чем у всех других известных саблезубых хищников. Они расположены параллельно, слегка расходясь в стороны на концах у взрослых особей, сплюснуты с боков и имеют трехгранную в поперечном сечении форму, что увеличивало их прочность при нагрузках; у плацентарных саблезубых хищников клыки овальные в поперечном сечении. Боковые поверхности верхних клыков по всей длине покрыты тонким, толщиной всего около 0,25 мм, слоем эмали. Очень длинные корни клыков, дугообразно проходящие наверху морды, над глазницами и заканчивающиеся над мозговой полостью, не замкнуты, что указывает на их постоянный рост. В отличие от саблезубых кошек, клыки находятся очень близко друг к другу. Несомненно, такие огромные верхние клыки имели для выживания первостепенное значение, иначе они не увеличились бы до столь значительных размеров. Нижние клыки расположены вертикально, они мелкие, довольно слабые и обладают цилиндрическими корнями. Подобно резцам грызунов, коронки нижних клыков изнашивались при контакте с кончиками верхних и поддерживали их остроту.
Черепа с нижними челюстями хищных саблезубых млекопитающих, приведенные в общем масштабе: вверху — нимравид Hoplophoneus, внизу слева — спарассодонт Thylacosmilus, внизу справа — кошачье Smilodon. Обращает на себя внимание то, что у плацентарных саблезубых имеются хорошо развитые резцы и мощные щечные зубы
Предкоренные зубы тилакосмила значительно редуцированы и уменьшены в размерах, Р1/р1 полностью отсутствуют. Между верхним клыком и предкоренными имеется небольшая диастема, очевидно возникшая на месте исчезнувшего предкоренного. Р2 конической формы, однокорневой; Р3 удлиненный, конический, с 2 корнями. На нижней челюсти между клыком и предкоренными находится широкая диастема. Нижние предкоренные простой конической формы, имеют по одному корню и несут выраженные следы износа.
Коренные зубы сравнительно небольшие. М1, М2 и М3 в большинстве случаев имеют сильно изношенные коронки. М3 продвинутого режущего типа, протокон и паракон на нем едва прослеживаются. М4 редуцирован до небольших размеров, его ширина больше длины; он обладает единственным корнем. Нижние коренные зубы сплюснуты с боков, с параконидом, протоконидом и талонидом, метаконид отсутствует. Как и верхние, они зачастую имеют сильно истертые коронки. m4 представляет собой хорошо развитый режущий зуб с уменьшенным талонидом. В целом щечные зубы максимально выражают характерную для спарассодонтов тенденцию утраты многих функциональных элементов жевательной поверхности.
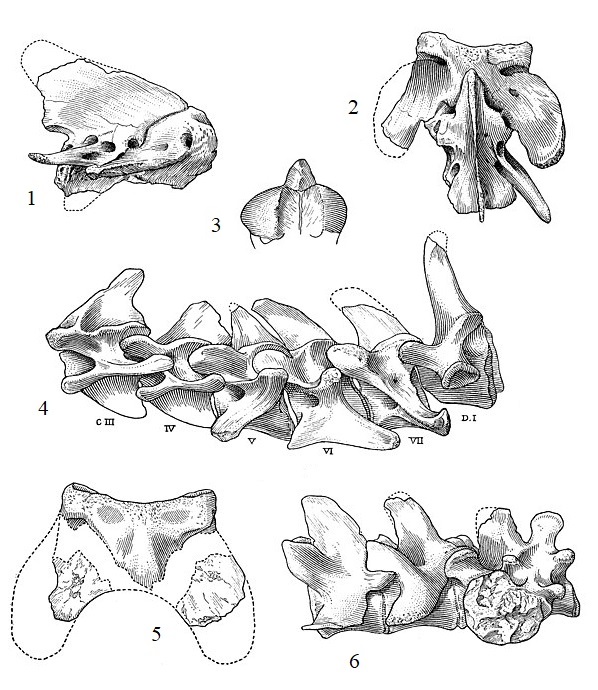
Прорисовки позвоночных элементов тилакосмила (Thylacosmilus atrox): 1, 2, 3 — эпистрофей справа сбоку, сверху и спереди; 4 — III-VII-е шейные и I-й грудной позвонки слева сбоку; 5 — атлант сверху; 6 — 2 задних поясничных и 2 крестцовых позвонка.
По обеим сторонам переднего конца нижней челюсти наличествуют характерные симфизные выступы — "лопасти", защищающие клыки при закрытой пасти. Они несколько загнуты назад и настолько велики, что даже при сомкнутых челюстях огромные верхние клыки как правило не достигают их нижнего края. Подобные отростки, выполнявшие ту же функцию, имеются у более древнего и примитивного представителя семейства — Anachlysictis, а также у многих саблезубых кошек (Machairodontinae), барбурофеловых (Barbourofelidae), нимравовых (Nimravidae), части растительноядных (например, у диноцератов (Dinocerata)) и целого ряда хищных терапсид (Therapsida), однако ни у кого из них эти выступы не достигали столь же исключительных размеров относительно черепа, как у тилакосмила. Симфизное сращение высокое, но слабо сросшееся.
При жизни нижнечелюстные отростки были покрыты кожей и при закрывании рта плотно вдвигались между клыками. Существует предположение, что на данных выступах располагались не сохранившиеся в ископаемом состоянии специальные образования из мягких тканей, в которых верхние клыки прятались при закрывании пасти, словно в ножнах. Однако если учесть, что клыки могли расти на протяжении всей жизни животного, то тогда вполне возможно допустить наступление момента, когда они просто перерастали длину отростков и, соответственно, гипотетических ножен. Помимо этого, подобные образования наверняка служили бы потенциальным источником инфекции, так как в них непременно должны были скапливаться частички пищи хищника. Таким образом, "футляров" для клыков скорее всего не было.
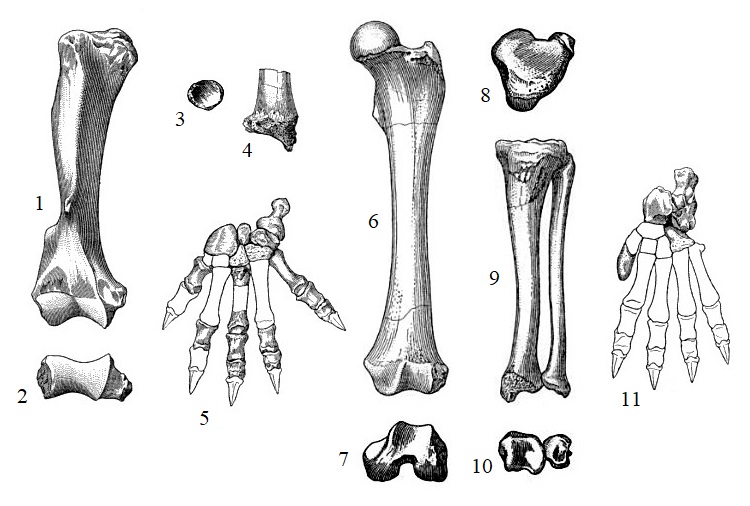
Прорисовки элементов конечностей тилакосмила (Thylacosmilus atrox): 1,2 — правое плечо спереди и дистально; 3, 4 — правая лучевая кость проксимально спереди и дистально сверху; 5 — левая кисть сверху; 6, 7 — левое бедро спереди и снизу; 8 — левая большеберцовая кость сверху; 9, 10 — левые большеберцовая и малоберцовая кости спереди и снизу; 11 — левая стопа сверху. Недостающие элементы стопы восстановлены на основе соответствующих костей сумчатого волка (Thylacinus cynocephalus).
Посткраниальный скелет тилакосмила в большей мере походит на таковой медведя, чем кошки. Подобно шейным позвонкам махайродонтин и других боргиеноидов, массивные шейные позвонки тилакосмила обладают выдающимся нижним килем и хорошо развитыми верхним и боковыми отростками для прикрепления сильных мышц, опускающих голову вниз и поворачивающих ее в стороны. Кроме того, шея тилакосмила, как и у многих других саблезубых хищников, была довольно длинной. Длинная, а не просто мускулистая шея была необходима этому животному для лучшего замаха, что обеспечивало большую скорость, а значит и силу удара верхними клыками. Не менее важное значение при нанесении укуса имел быстрый и точный поворот головы. Кроме того, мощная шейная мускулатура компенсировала относительную слабость их челюстных мышц, что выражается у тилакосмила особенно ярко. Туловище предположительно было относительно длинным. Вертикальное положение верхних отростков 2 последних известных поясничных позвонков позволяет предположить, что антиклинальный позвонок отсутствовал. Сами поясничные позвонки короткие и образуют более жесткую конструкцию, чем у Prothylacynus, надежно стабилизированную длиннейшими мышцами спины. Крестец состоит из 2 сросшихся позвонков. Хвост предположительно был довольно длинным, толстым и жестким.
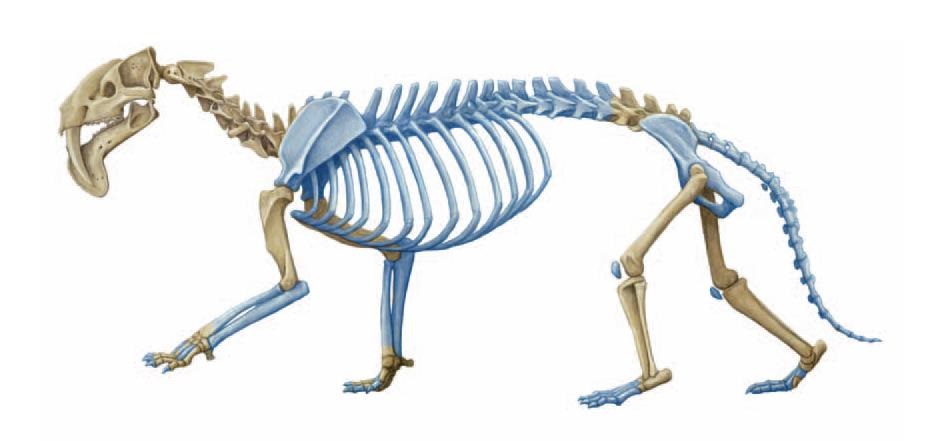
Прорисовка реконструированного скелета тилакосмила (Thylacosmilus atrox). Синим цветом показаны отсутствующие элементы, достроенные на основании изучения скелетов других боргиеноидов. Автор — М. Антон.
Конечности тилакосмила довольно короткие и мощные. Их длинные кости отличаются массивностью и явно могли выдерживать значительные нагрузки. Плечевая кость с большим дельтопекторальным гребнем, составляющим 60 % ее длины. Энтепикондилярное отверстие у данной кости отсутствует, что коррелирует с уменьшением отводящего движения плеча у быстро бегающих копытных и плотоядных (это состояние также наблюдается у Borhyaena), хотя это контрастирует с его, по-видимому, мощными приводящими мышцами. Лучевая кость предположительно длиннее плечевой. Локтевая и запястные кости свободные. Кисть широкая, с 5 широко расставленными пальцами. Бедренная с сильно развитым большим вертлугом. Большеберцовая кость короче бедренной, малоберцовая кость свободная. Стопа широкая, пятипалая. I-й палец состоит из единственной редуцированной фаланги. Передние конечности полупальцеходящие, задние — стопоходящие. Судя по всему, когти были массивными, короткими и довольно острыми, но, в отличие от когтей кошачьих (Felidae) и нимравовых (Nimravidae), не могли втягиваться. Определенная подвижность тазобедренных суставов может указывать на способность подниматься на задних конечностях, что также предполагается для Prothylacynus и Borhyaena.
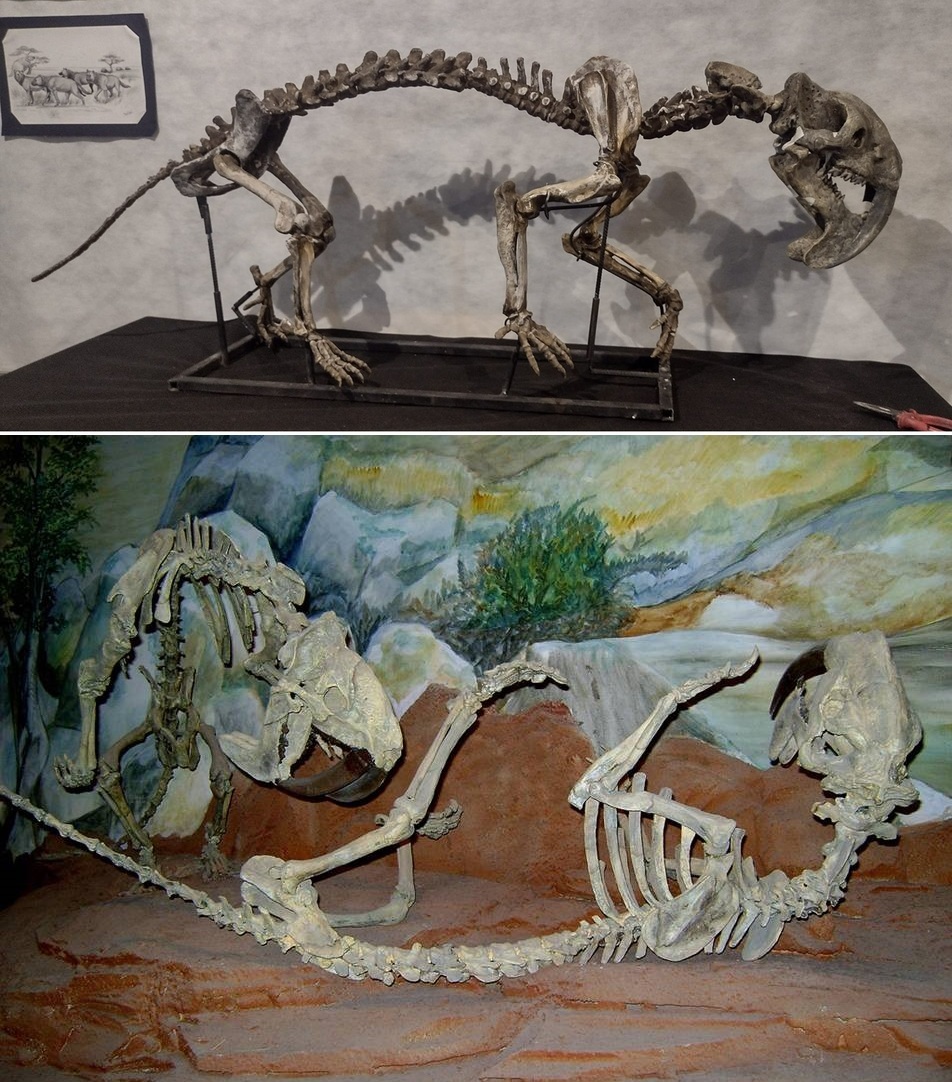
Реконструированные скелеты тилакосмила (Thylacosmilus atrox). Внизу: Палеонтологический музей им. Эджидио Феруглио, Трелев.
Головной мозг тилакосмила, как и у прочих сумчатых, был довольно примитивно устроенным. Для него характерны крупные обонятельные луковицы и относительно небольшие, покрытые извилинами полушария переднего мозга. Изучение эндокраниальных слепков показало, что 27 % коры полушарий обслуживало соматическую нервную систему, при этом зрительная область составляет18 %, а слуховая — 7%. Палеокортекс занимает более 8 % всей площади коры. Борозды относительно сложны, по форме и количеству напоминая таковые современных двурезцовых сумчатых (Diprotodontia). По сравнению с Macropus и Trichosurus, наблюдается меньшее развитие верхнечелюстной области по отношению к нижнечелюстной, а ринальная щель относительно выше, чем у Macropus и Thylacinus. Это несоответствие между верхне- и нижнечелюстной областями, которые примерно одинаковы у других сумчатых, по-видимому, является следствием крайнего развития шейной и нижнечелюстной мускулатуры. При этом площадь, отведенная под ротово-нижнечелюстную область, составляет 42 % коры, отвечающей за соматику. Коэффициент энцефализации составляет 0,27-0,3, что относительно ниже, чем у Hathliacynidae, но выше, чем у Borhyaenidae.
Окраска шерсти тилакосмила с определенной степенью достоверности реконструируется благодаря изучению ныне живущих сумчатых. Если этот зверь был лесным обитателем, весьма вероятным для него являлся темный фон со светлыми пятнами — это стандартная для сумчатых схема окраса. Если животное населяло более открытые пространства, оно могло быть однотонным.
Образ жизни
Анатомическое строение тилакосмила свидетельствует о том, что он специализировался в охоте на крупных, хорошо защищенных, но при этом медлительных млекопитающих из засады или путем скрадывания. Судя по устройству конечностей, этот хищник практически не был приспособлен к быстрому бегу и, тем более, к прыжкам. Наиболее вероятной добычей тилакосмила являются относительно громозкие нотоунгуляты, крупные кавиоморфные грызуны и наземные ленивцы. Что касается легко сложенных нотоунгулятов и литоптерн, то они в большинстве своем отличались исключительной верткостью и маневренностью и поэтому вряд ли часто становились добычей этого сравнительно медлительного хищника. Все же нельзя полностью исключать возможность того, что он мог нападать на подобных быстроногих животных, скрадывая их и полагаясь на точность решающего броска.
Тилакосмил (Thylacosmilus atrox) в естественном окружении. Автор — Р. Евсеев.
Потенциальные жертвы тилакосмила обычно имели толстую или даже бронированную шкуру и порой в десятки раз превосходили его по своему весу. Во избежание повреждения тонких клыков, укус этим хищником наносился преимущественно в область брюха, или сбоку в шею у относительно некрупных животных. Морфологический анализ лап и плечевого пояса, а также изучение способов охоты ряда современных сумчатых и плацентарных хищников позволяют утверждать, что тилакосмил активно использовал передние конечности для удержания и обездвиживания жертвы наподобие того, как это сейчас делают большие кошки. В частности, особенности строения плечевой кости предполагают сильное развитие грудной и дельтовидной мышц, необходимых не только для захвата добычи, но и для поглощения энергии удара при столкновении с ней. Рана от огромных и близко расположенных верхних клыков, нанесенная в наиболее уязвимую часть тела жертвы, вызывала у последней обильное кровотечение. Когда добыча ослабевала настолько, что уже не могла двигаться, хищник приступал к процессу питания.
Вопрос о том, каким образом тилакосмил разделывал туши убитых им животных, натыкается на некоторые трудности. Дело в том, что зубочелюстной аппарат тилакосмила, столь высоко специализированный к убийству крупной добычи, на первый взгляд кажется практически неприспособленным к дальнейшей ее утилизации. Почти полностью отсутствующие резцы, громадные верхние клыки (достаточно острые только на своих кончиках), небольшие щечные зубы, слабые челюстные мышцы — все это совсем не способствовало разрыванию плотных внешних покровов, разрезанию сухожилий и отделению кусков мяса поверженной добычи. Микроизнос поверхности зубов подтвердил, что хищник потреблял преимущественно мягкие ткани без костей, подобно современному гепарду (Acinonyx jubatus).
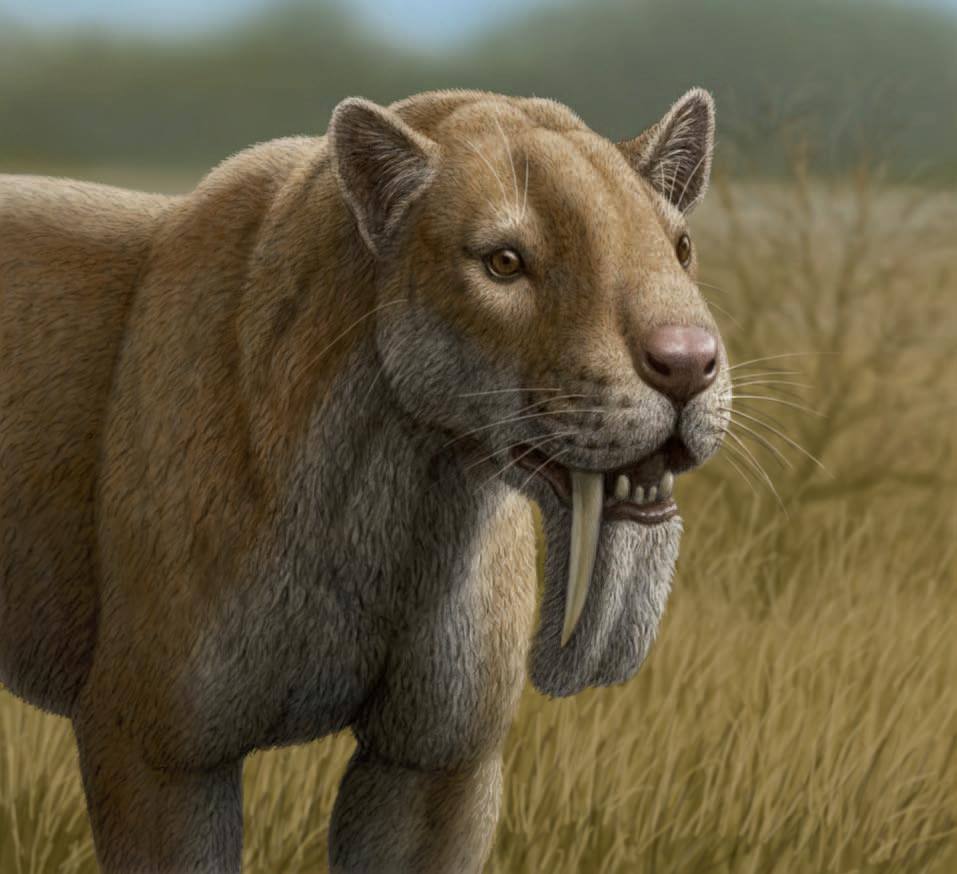
Этапы портретной реконструкции тилакосмила (Thylacosmilus atrox). Автор — Р. Евсеев.
Высказывались предположения, что тилакосмил питался преимущественно внутренними органами и даже кровью своих жертв, однако выглядят они неправдоподобно. Питание кровью не просто потребовало бы коренной перестройки зубочелюстного аппарата по сравнению с тем, что мы наблюдаем, оно попросту невозможно для столь крупного животного. Питание исключительно внутренностями выглядит нерационально с экологической точки зрения — маловероятно, что такой крупный хищник довольствовался настолько малой долей добычи и бросал нетронутой основную ее часть. Кроме того, длинные верхние клыки должны были сильно мешать при попытке извлечь из грудной клетки сердце и легкие.
Таким образом, остается предполагать, что тилакосмил потреблял более или менее существенную часть туши, включая значительную часть мяса и внутренние органы. Но чтобы добраться до них, хищнику сначала необходимо было вскрыть плотные кожные покровы добытого им животного. Производилось это именно зубами, так как помимо них, ничем другим зверь действовать не был способен. Вероятно, тилакосмил поедал свою жертву, начиная с наиболее мягкого паха. Очевидно, ткани разрезались, откусывались и разжевывались щечными зубами, как это происходит у плацентарных хищников. Именно по причине активного использования щечных зубов они и доходят до нас преимущественно в сильно изношенном состоянии. Что же касается стилетообразных верхних клыков, то рвать ими добычу тилакосмил не мог — для этого они были слишком длинными и тонкими, и попросту не выдержали бы сильной боковой нагрузки. При этом с прямыми вытягивающими движениями при извлечении внутренностей клыки справлялись неплохо.

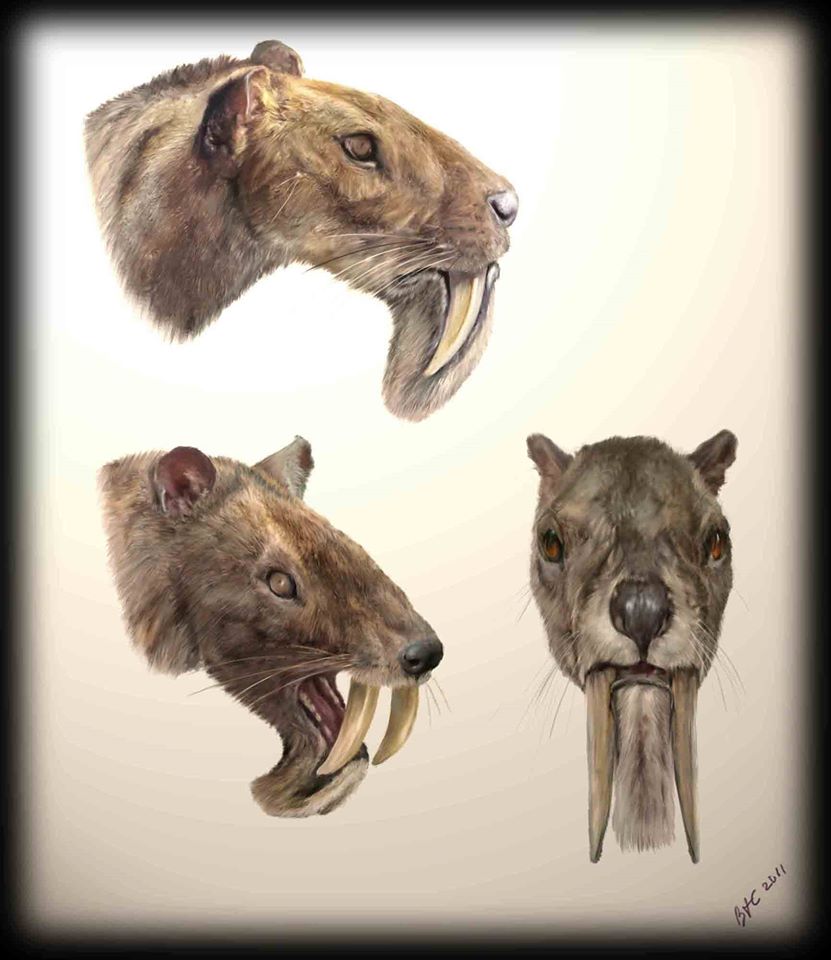
Портретные реконструкции тилакосмила (Thylacosmilus atrox). Автор — В. Симеоновски.
Редукция резцов говорит о том, что тилакосмил не был способен эффективно соскребывать мясо с костей и поэтому оставлял падальщикам довольно значительную часть добычи. Не исключено, впрочем, что язык тилакосмила являлся достаточно длинным, мускулистым и был покрыт роговыми зубчиками, выраженными сильнее, чем у современных крупных кошек. Такой язык действовал подобно терке и при активном лизании отделял маленькие кусочки плоти, а при погружении в брюшную полость захватывал мягкие внутренние органы и проталкивал их на щечные зубы. Эта специализация языка, берущего на себя функцию резцов и щечных зубов, как раз и могла способствовать их редукции. (Последнее, кстати, встречается и у плацентарных специалистов: например, у муравьедов зубов нет вообще, а у моржа (Odobenus rosmarus) отсутствие резцов и мускулистый язык позволяет всасывать корм из морской воды.) Кроме того, при разделывании туши тилакосмил наверняка помогал себе сильными передними лапами с острыми невтяжными когтями.
Поскольку тилакосмил съедал добычу не полностью, охотиться он вынужден был довольно часто. Вероятно, при возможности им охотно поедались и подвернувшиеся трупы крупных животных, однако рассчитывать на них особо не приходилось — падаль, особенно ее мясистые части и внутренние органы с высокой питательной ценностью, в первую очередь съедалась более мелкими хищниками, численность которых была явно выше и которые поэтому находили трупы быстрее.
Портретная реконструкция тилакосмила (Thylacosmilus atrox). Автор — М. Антон.
Согласно результатам проведенного анализа, тилакосмил обладал ограниченным бинокулярным зрением с перекрытием зрительных полей небольших глаз, составляющим всего 50-60 °, что очень мало по сравнению с современными хищниками. В сочетании с большими окостеневшими слуховыми барабанами это может указывать на то, что он являлся засадным хищником, охотящимся в открытых и относительно сухих местностях, где звукопоглощение меньше, чем в более влажных районах, а острый слух мог компенсировать ограниченное зрение. Не исключено также, что он вел ночной образ жизни.
Своеобразная морфология зубной системы тилакосмила служит косвенным подтверждением сравнительно небольшой продолжительности его жизни. Сумчатые, как правило, вообще живут недолго, но в случае тилакосмила имеются также дополнительное свидетельство — очень значительная истертость большинства дошедших до нас щечных зубов. Так как они постепенно изнашивались (не восстанавливаясь, в отличие от клыков) практически при каждом приеме пищи, то за сравнительно небольшое количество лет достигали настолько плачевного состояния, что зверь уже не мог эффективно ими пользоваться и попросту умирал от голода.
О социальности тилакосмила достоверно ничего неизвестно, но об этом вопросе с определенной степенью уверенности можно судить благодаря исследованиям поведения современных сумчатых хищников. Очевидно, тилакосмил жил в одиночку. Каждая взрослая особь занимала свой охотничий участок и только в период размножения самка и самец могли некоторое время держаться рядом. В дальнейшем самка растила единственного или нескольких своих отпрысков. Наличие выводковой сумки у тилакосмила не установлено (она и сейчас имеется не у всех сумчатых). Если сумка была, то, вероятнее всего, открывалась назад, что обеспечивало лучшую защиту молодняка во время охоты матери. Не исключено также, что самка учила охотиться своих подросших детенышей.
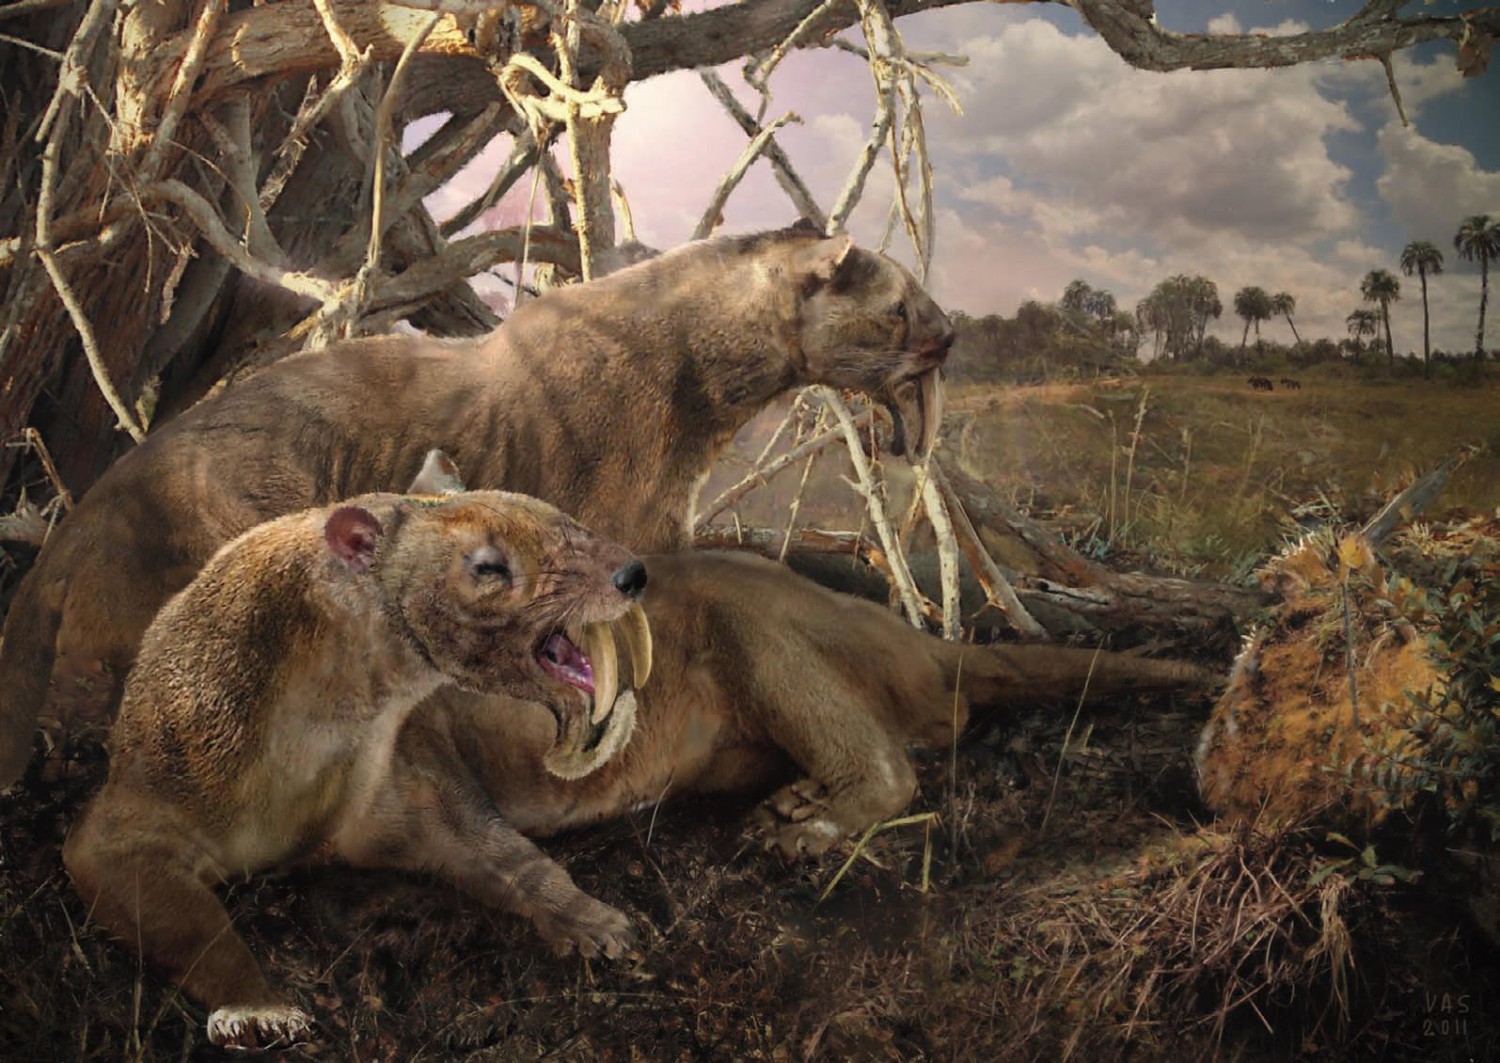
Пара отдыхающих тилакосмилов (Thylacosmilus atrox). Автор — В. Симеоновски.
Существует предположение, что высокоспециализированный хищнический образ жизни тилакосмила может свидетельствовать о его более выраженной заботе о потомстве, чем у современных сумчатых хищников, поскольку техника умерщвления могла полноценно использоваться лишь взрослыми особями с полностью развитыми верхними клыками и физической силой для обездвижывания жертвы. Кроме того, молодым требовалось определенное время, чтобы освоить необходимые охотничьи навыки. Тем не менее, такое кооперативное поведение для современных сумчатых неизвестно, а по ископаемому материалу однозначно судить о его наличии не представляется возможным.
Тилакосмил жил рядом с очень крупными нелетающими хищными птицами семейства форораковых (Phorusrhacidae). Как и тилакосмил, форораки часто охотились на крупных млекопитающих, что могло порождать между этими хищниками конкуренцию. К тому же, форораки предположительно являлись стайными животными, тогда как тилакосмил вел одиночный или, в крайнем случае, парный (семейный) образ жизни. Однако эти птицы скорее всего населяли открытые ландшафты, в то время как пропорции тилакосмила указывают на то, что он предпочитал саванные редколесья. При беге форораки могли развивать значительную скорость и, судя по всему, были очень выносливыми. Вероятно, и тилакосмил в свою очередь являлся довольно выносливым животным (что в целом характерно для сумчатых), однако далеко не таким быстрым, как форораки. Очевидно, эти пернатые хищники в большей или меньшей мере создавали определенное давление на популяцию тилакосмила. Так или иначе, он является единственным действительно крупным аборигенным хищником Южной Америки, который на протяжении достаточно длительного времени сосуществовал с форораками. Помимо этих агрессивных и быстро бегающих птиц, на открытых равнинах конкуренцию тилакосмилу мог составлять гигантский грифоподобный тераторнитид Argentavis.

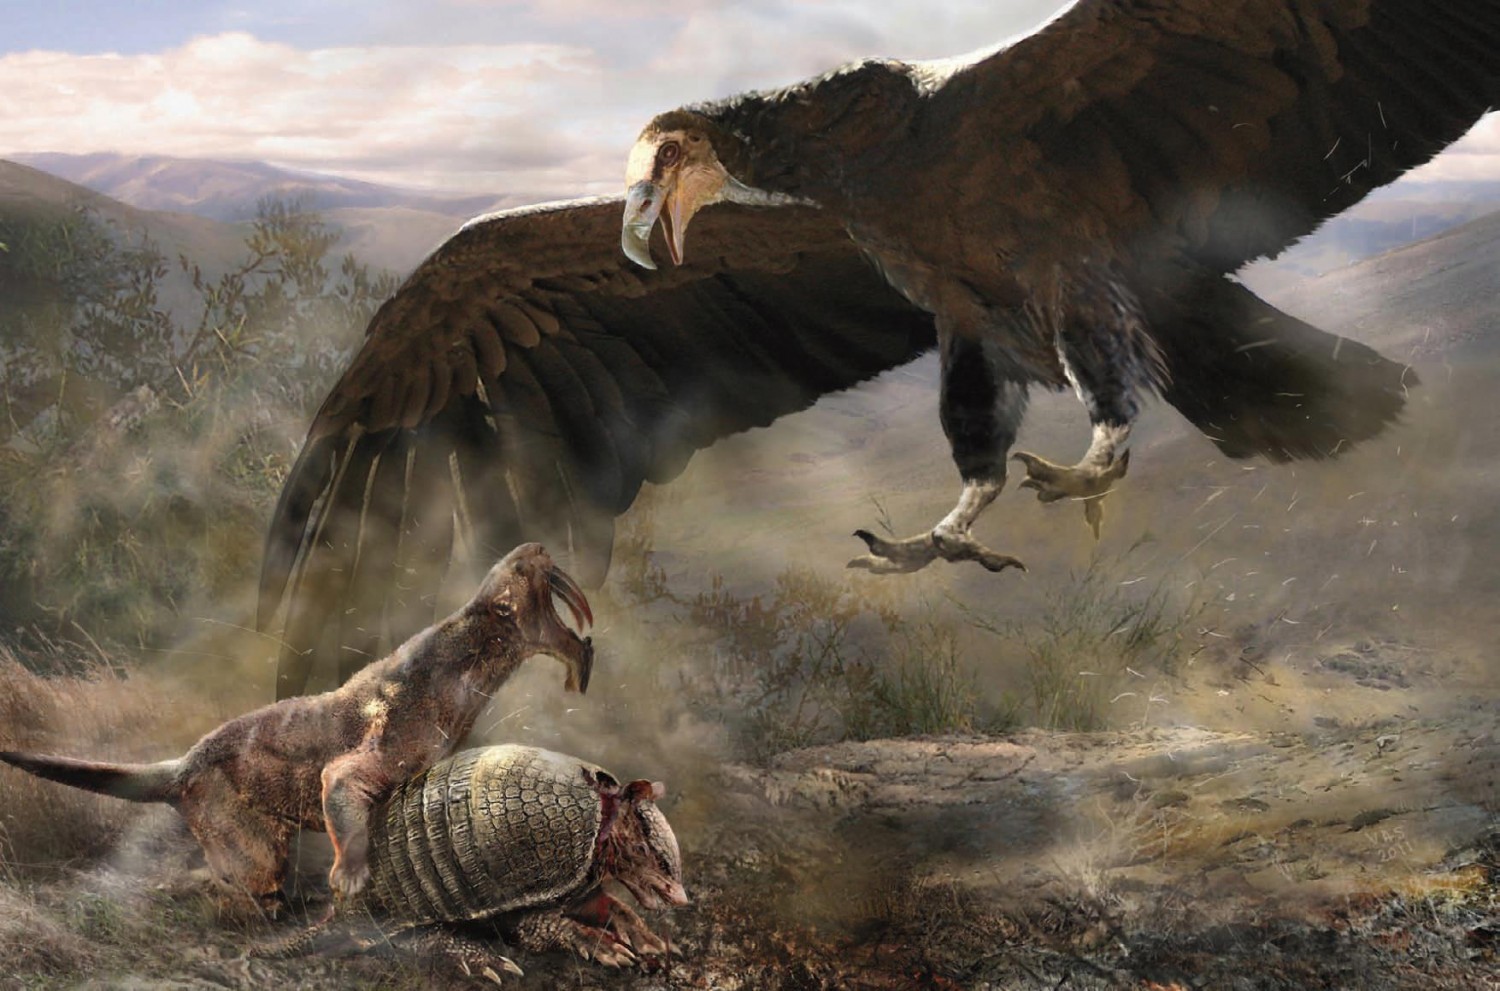
Гигантский тераторн аргентавис (Argentavis magnificens) пытается отнять у тилакосмила (Thylacosmilus atrox) его добычу — броненосца вассаллию (Vassallia maxim). Автор — В. Симеоновски.
Вымирание
Тилакосмил является одним из последних известных спарассодонтов. Причины его исчезновения не выяснены. Одним из наиболее распространенных предположений, объясняющим вымирание, является миграция крупных представителей семейства кошачьих (Felidae) из Северной Америки в Южную после образования Панамского перешейка. На первый взгляд, эта версия кажется весьма логичной, поскольку, являясь плацентарными, кошки находились на более высоком уровне физической организации, обладали лучше развитым интеллектом, а некоторые из них могли вести коллективный образ жизни. Однако у этой гипотезы имеется существенный недостаток. Дело в том, что, согласно имеющимся данным, тилакосмил вымирает порядка 3,5-3 млн. лет назад, т. е. задолго до прихода в Южную Америку больших кошек, которые появляются здесь не менее чем 1 млн. лет спустя.
Можно также предположить, что тилакосмила постепенно вытеснили форораки, но в таком случае остается непонятным, как он вообще мог эволюционировать, ведь этот сумчатый хищник появляется в эпоху, когда семейство форораковых как раз находилось в полном расцвете. Вероятно, исчезновение тилакосмила было сопряжено с целой совокупностью факторов. Например, к этому могла привести смена состава фауны растительноядных млекопитающих, происходившая на фоне постоянного натиска форораков в период поднятия Андской горной цепи и глобального иссушения климата. Крупные размеры тела в сочетании с довольно ограниченным распространением повышали уязвимость тилакосмила к изменениям жизненной среды.
Ссылки
Новиковская А. Тилакосмил, сумчатый саблезубый тигр. — 2022 (Элементы.Ру)
перейти Thylacosmilus (Paleobiology Database)
перейти
Литература
Быстров А.П. Находка саблезубого сумчатого хищника. Природа 12, 1934
Кэрролл Р. Палеонтология и эволюция позвоночных. В 3 т. Т. 3 — М.: Мир, 1993
Симпсон Дж. Великолепная изоляция. История млекопитающих Южной Америки. — М.: Мир, 1983
Тернер А., Антон М. Большая энциклопедия доисторических животных. — М.: Оникс, 2006
Шпинар З., Буриан З. История жизни на Земле. — Прага: Артия, 1977
Antón M. Sabertooth. — Bloomington & Indianapolis: Indiana University Press, 2013
Croft D. A. Horned armadillos and rafting monkeys: the fascinating fossil mammals of South America. — Bloomington: Indiana University Press, 2016